


新发人感染猪链球菌2例报道
作者:王小龙,王梓璇,高 丹,杨小蓉等,内江市第二人民医院检验科,内江市疾病预防控制中心检验科,四川省疾病预防控制中心微生物所
猪链球菌(Streptococcus suis,S. suis)是一种重要的人畜共患病原体,主要定植于猪上呼吸道,也可在家禽、反刍动物等多种动物宿主中检出[1-2] 。人类感染猪链球菌相对罕见,但可通过破损皮肤或黏膜接触传播,导致严重的侵袭性疾病,包括化脓性脑膜炎 、败血症,以及致死率较高的链球菌中毒性休克综合征[3- 4] 。此外,由该病原体引起的多种侵袭性感染,如感染性眼内炎、化脓性脊柱炎、感染性心内膜炎和细菌性肺炎,也有报道[5-8] 。猪链球菌病具有显著的地域聚集性,东亚地区高发,2005年中国四川省发生的疫情报告病例200余例,其中39例死亡[9] 。2022年7—8月,四川省某医疗机构再次从临床患者样本中分离出2株猪链球菌。本文报道这2株分离菌株系统的表型分析和全基因组测序分析结果,以阐明菌株的分子流行病学特征、毒力、耐药性,为人猪链球菌感染的精准防控提供科学依据。
1 病例资料
1.1 病例1
男,56岁,因“寒战、发热伴意识障碍1 d”于2022年7月24日入院,收治于神经外科。现病史:患者入院前1天突发寒战、高热(体温峰值38.8 ℃),伴进行性意识障碍(表现为胡言乱语、烦躁不安),持续约2 d。呕吐胃内容物数次,伴咳嗽、咳黄痰,无腹痛、胸痛等不适。既往体健,否认高血压、糖尿病、手术和外伤史。入院查体:体温37.5 ℃,脉搏8 4次·m i n-1,呼吸2 0次·m i n-1,血压 12.77/8.25 kPa(96/62 mmHg);嗜睡,烦躁不安,颈抵抗(+),双侧瞳孔等大等圆(直径3 mm),对光反射灵敏;双肺呼吸音粗,可闻及湿啰音及痰鸣音;心律齐,未闻及病理性杂音;腹软,无压痛及反跳痛;双下肢肌力、肌张力正常,病理征未引出。实验室检测示:白细胞17.52×10⁹L-1↑(中性粒细胞百分比90.2%↑),降钙素原4.69 ng·mL-1;脑脊液检测示外观淡黄色,微浑浊,白细胞1 096×106L-1↑ (单个核细胞百分比19%,多核细胞百分比81%),红细胞1 000×106L-1,葡萄糖1.07 mmol·L-1↓, 乳酸脱氢酶155 U·L-1↑,腺苷酸脱氢酶2.4 U·L-1, 氯离子115 mmol·L-1,总蛋白3 321 mg·L-1↑;病原学检查示脑脊液涂片未见隐球菌,同步送检培养、血培养;影像学检查示脑组织肿胀,慢性支气管炎、肺气肿。诊疗经过:入院初步诊断为化脓性脑膜炎,经验性予以静脉注射万古霉素(0.5 g q8h)联合美罗培南(0.5 g q8h)抗感染治疗,当日转入重症监护室。7月27日,脑脊液培养回报检出革兰阳性球菌,次日报告为猪链球菌,体外药物敏感性试验结果显示对青霉素、头孢曲松钠敏感,血培养阴性。遂调整抗感染方案为静脉注射青霉素(400万单位q12h)联合头孢曲松(2.0 g qd)。转归:经持续抗感染治疗,患者病情逐步改善,于8月5日主动要求出院。出院诊断为化脓性脑炎(猪链球菌感染),重度听力障碍。流行病学调查示患者家中饲养少量家禽及家畜,近期无动物异常死亡情况,共同居住者及邻近居民均未报告类似病例,无明确流行病学暴露史。
1.2 病例2
男,78岁,因“突发头晕伴步态不稳1 d”于2022年7月27日入院,收治于神经内科。现病史:患者入院前1天午睡时突发眩晕,伴恶心、呕吐胃内容物1次,无意识障碍、心悸、腹痛等症状。既往体健,否认高血压、冠心病等慢病史,无手术和外伤史。入院查体:体温36.5 ℃,脉搏72次·min-1,呼吸20次·min-1,血压17.42/ 8.25 kPa(131/62 mmHg),体重40.0 kg;神志清,双侧听力明显减退(粗测),步态共济失调,双上肢指鼻试验欠稳准;双肺呼吸音清,未闻及干、湿啰音;心律齐,未闻及病理性杂音;腹软,剑突下轻度压痛,无反跳痛。实验室检测示:白细胞 12.82×10⁹L-1↑(中性粒细胞百分比89.7%↑),降钙素原1.05 ng·mL-1↑;脑脊液检测示外观无色透明,白细胞205×106L-1↑(单个核细胞百分比65%,多核细胞百分比35%),红细胞1 000×106L-1,葡萄糖2.38 mmol·L-1↓,乳酸脱氢酶70 U·L-1,腺苷酸脱氢酶6.0 U·L-1,氯离 子119.9 mmol·L-1,总蛋白935 mg·L-1↑;病原学检查示脑脊液涂片、培养均阴性,血培养阳性。影像学检查未见急性期梗死灶。诊疗经过:入院初步诊断为急性后循环缺血。7月31日出现低热(体温37.9 ℃)伴咳嗽,送检血培养并经验性静脉注射头孢他啶(1.0 g q12h)抗感染治疗。8月1日血培养回报检出革兰阳性球菌,次日报告为猪链球菌,体外药物敏感性试验结果显示对头孢曲松、左氧氟沙星、青霉素敏感,调整抗感染方案为静脉注射头孢曲松-他唑巴坦(1.0 g q12h),并辅以甘露醇脱水治疗。转归:经治疗患者症状有所改善,于8月3日主动要求出院。流行病学调查示患者在症状出现前10天曾有食用病死猪肉史。与病例1居住地相距较远,未发现流行病学关联。
2 菌株鉴定和体外药物敏感性试验
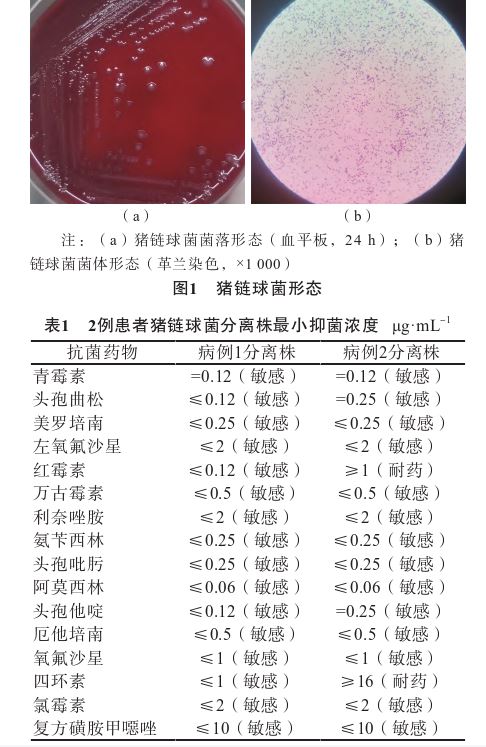
分离菌株在血琼脂平板和巧克力平板上均生长良好,在35 ℃、5%CO2培养条件下孵育18~24 h后,可见圆形、凸起、表面光滑湿润、边缘整齐的灰白色半透明菌落,直径1~ 2 mm,周围可见α-溶血环,该菌株在麦康凯平板上未见生长,符合猪链球菌的营养需求特性[图1(a)]。革兰染色镜检显示菌体呈革兰阳性,形态为球形或卵圆形,直径0.5~1.0 μm,多呈短链状排列,偶见双球菌样排列[图1(b)]。鉴定结果为猪链球菌Ⅱ型(Streptococcus suis type Ⅱ),可信度99%。体外药物敏感性试验结果见表1。
3 全基因组测序结果
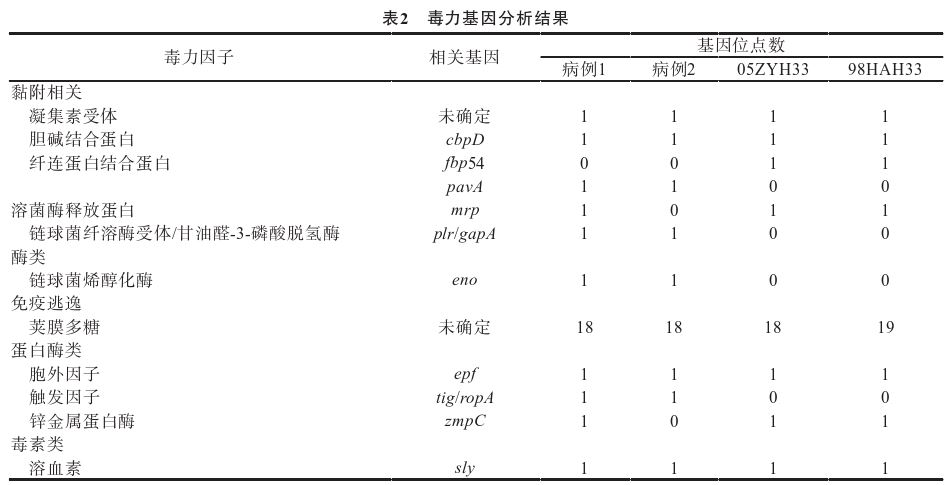
病例1和病例2分离株的基因组大小分别为2 044 499和2 068 639 bp,GC含量均为41.2%,基因特征数分别为2 141和2 263个,含编码基因(CDS)1 190和1 197个,占52.89%~55.58%。基于7个管家基因(aroA、cpn60、dpr、gki、mutS、recA和thrA)的多位点序列分型分析结果显示,2株菌均属于ST1型,与亚洲地区流行的强毒力株型一致。共鉴定出11个毒力相关基因,分属黏附、酶、免疫逃逸、蛋白酶和毒素相关基因5个功能类别,与参考菌株05ZYH33和98HAH33(NCBI登录号:CP000407、CP000408)相比,2株临床分离株在少数基因组标签数量上存在差异,见表2。2株菌均携带四环素耐药基因,病例1分离株为tet(M),病例2分离株为tet(O);另外,病例1还携带链霉素耐
4 系统发育分析
采用MEGA 11软件进行基于16S rRNA基因序列的系统发育分析,通过NCBI BLAST比对筛选获得与2株临床分离株高度同源的各100条参考序列,经过去重处理后,最终纳入101条代表性序列进行邻接法进化树构建,结果显示,宿主分布以猪源菌株为主(48.5%,49/101),其次为人源菌株(23.8%,24/101);地理分布显示亚洲来源序列占52.5%(53/101),其中中国来源序列占73.6%(39/53),欧洲来源序列占43.6%(44/101);时序分析结果显示70.3%(71/101)的序列提交于2022年前。值得注意的是,系统发育树中形成了1个特征性进化分支,包含本研究分离株和另外20条参考序列,该分支以亚洲序列占优势,包含9条中国来源序列,且亚洲序列提交时间普遍早于同分支欧洲序列。虽然部分菌株精确分离时间缺失对时序分析造成一定限制,但系统发育拓扑结构明确显示本次分离株与参考序列间存在显著遗传相关性,为猪链球菌分子流行病学研究提供了重要线索。
5 讨论
猪链球菌在病原学特征上与化脓性链球菌存在一定相似性,但其独特的神经侵袭性使其表现出显著的临床差异。该病原体具有特殊的血脑屏障穿透能力,可导致中枢神经系统感染,临床表现为化脓性脑膜炎、败血症等严重症状,病死率可达18.6%,并常伴随感音神经性耳聋等特征性后遗症,发生率>50%[10-12] 。作为人畜共患病原体,直接接触感染动物或其制品是主要传播途径,特别是在生猪屠宰行业具有显著的职业暴露风险[13] 。
早期诊断对猪链球菌感染的精准治疗意义重大,但猪链球菌感染的临床症状往往不典型,虽然病例1表现为典型的化脓性脑膜炎症状,而病例2仅以非特异性神经系统症状起病,2例均表现出显著的外周血炎症指标升高和脑脊液化脓性改变,这一特征可作为早期筛查的重要参考,尤其是具有病死猪或猪肉接触史者,应考虑猪链球菌感染可能,并及时进行血培养和脑脊液检查[14] 。病原学培养是确诊猪链球菌感染的金标准,但其检出率受多种因素影响,本病例1仅首次脑脊液培养呈阳性,后续脑脊液、血液培养均为阴性;病例2仅血培养阳性,而脑脊液培养阴性;推测可能与采样时机和样本质量等因素相关[15] 。为提高病原学检出率,可采用宏基因组测序、16S rRNA基因测序和CRISPR/Cas系统等分子生物学技术直接检测病原体核酸。本次分离的猪链球菌菌株对β-内酰胺类抗菌药物敏感率较高,但对四环素、红霉素等药物表现出一定耐药性,与耐药基因分析结果一致。这可能与生猪养殖业中相关抗菌药物的长期使用有关[16] 。值得注意的是,细菌耐药性的持续增强已成为全球公共卫生的重要挑战,耐药菌株的流行不仅增加了临床治疗的难度,还可能促进耐药基因在人群中的传播,进而引发难以控制的疫情。近年来,东南亚地区已报道多重耐药猪链球菌引起的暴发流行,提示需加强耐药性监测,并优化抗菌药物使用策略,以遏制耐药菌株的进一步扩散[17] 。
毒力因子作为毒力基因的表达产物,是微生物在宿主体内增强生存能力和致病性的关键分子基础,主要包括毒素、黏附因子、免疫逃逸蛋白和水解酶。有研究发现,猪链球菌基因组可携带超过25种毒力相关基因,其中高毒力菌株与低毒力菌株在基因谱上存在显著差异。mrp、sly和epf已被确认为高毒力菌株的标志性基因,其编码产物在细菌侵袭、溶血和免疫逃逸中发挥关键作 用[18-19] 。本病例1分离株携带完整的mrp、sly和epf基因簇,而病例2分离株则缺失mrp基因,提示病例1携带的基因可能具有更强的致病潜力。进一步基因组比对发现,临床分离株与参考菌株相比存在显著的遗传变异,包括fbp54基因的缺失、pav A的替代,以及新出现的plr/gap A、eno和tig/rop A等基因,这些新鉴定的基因与肺炎链球菌的同源基因高度相似,提示了跨菌种水平基因转移的可能 性[20] 。另外,2株临床分离株表现出耐药性与毒力的互斥性,提示耐药基因与毒力基因可能竞争相同基因组位点或调控资源而产生拮抗作用,这一现象可能反映了病原体在进化过程中为平衡毒力与耐药性所付出的适应性代价[20] 。分子分型结果显示,2株分离株均为ST1型,该型和ST7型是我国猪链球菌主要流行株,目前,Pub MLST数据库已收录超4 000个猪链球菌ST型别,其中ST1型多引起散发病例,而ST7型则与多起暴发疫情相关,提示ST1型可能具有相对较低的传播效率[21] 。
基于全基因组测序的系统发育分析结果表明,2株分离菌株与全球数据库中的参考菌株具有高度基因组一致性,证实调查病例为孤立散发事件,提示四川省发生大规模流行的风险较低。随着高毒力株和多重耐药株的不断出现,猪链球菌的人畜共患传播已成为全球公共卫生领域的重要挑战,需要持续监测和防控。
参考文献略。
来源:王小龙,王梓璇,高丹,等. 新发人感染猪链球菌2例报道[J]. 检验医学,2025,40(12):1237-1240.
